
La peau, le conduit auditif et l’intestin du chien abritent des communautés de bactéries et de champignons dont l’équilibre participe à la santé de l’hôte. Le séquençage de l’ADN microbien a montré ces dernières années que ces communautés sont bien plus riches que ce que la culture laissait voir.
William BORDEAU, DVM
Cabinet VetDerm, Maisons Alfort (94)
Novembre 2026
Ce séquençage a révélé qu’elles changent chez le chien atopique. Ainsi, la peau atopique perd de sa diversité au profit de Staphylococcus pseudintermedius, ce qui relie directement le microbiome aux poussées et aux infections secondaires. Malassezia pachydermatis y est aussi significativement plus abondante. Depuis dix ans, l’intérêt s’est étendu à l’intestin, car le microbiote digestif participe à la maturation du système immunitaire et pourrait influencer la peau à distance. Ces données ont fait naître des traitements nouveaux, des probiotiques à la transplantation de microbiote fécal. Le point porte ici sur ce que les études canines établissent, de la peau et de l’oreille jusqu’à l’intestin, et sur ce qu’elles laissent encore ouvert.
1 Microbiote, microbiome, dysbiose : définitions et méthodes
1.1 Définitions
Le microbiote désigne l’ensemble des micro-organismes qui vivent sur un site donné, et le microbiome l’ensemble de leurs gènes. L’usage confond toutefois souvent les deux termes (Torres, 2017). La dysbiose est un déséquilibre de ce microbiote, quantitatif ou qualitatif (Martin Cordero, 2019). Sur la peau, on distingue une population résidente, relativement stable, et une population transitoire qui ne persiste que quelques heures ou quelques jours (Tizard, 2025). Les deux contiennent des commensaux et des pathogènes potentiels, si bien que la présence d’un germe ne suffit pas à définir une maladie.
Un probiotique est un micro-organisme vivant qui apporte un bénéfice à l’hôte lorsqu’il est consommé en quantité suffisante. Un prébiotique est un composant alimentaire non digestible, souvent une fibre, qui favorise la croissance des bactéries bénéfiques. Un postbiotique est un produit de la fermentation des probiotiques, qui comprend leurs métabolites et des fragments de leur paroi. Un synbiotique associe enfin un probiotique et un prébiotique (Rostaher, 2026a). La définition internationale de l’ISAPP inclut aussi dans les postbiotiques les micro-organismes inactivés et leurs composants (Bonel-Ayuso et al., 2025). L’inactivation d’une bactérie se fait le plus souvent par la chaleur, notamment par tyndallisation, qui alterne des températures de 70 à 100 °C et des températures plus basses. La bactérie garde alors sa paroi, et ses effets immunologiques restent proches de ceux de la bactérie vivante (Santoro, 2022).
1.2 Méthodes et limites des études
La culture ne fait pousser qu’une petite partie des bactéries présentes. Au contraire, le séquençage identifie sans culture la plupart des genres présents : celui du gène de l’ARN ribosomique 16S pour les bactéries, celui de la région ITS pour les champignons. Ce séquençage ciblé rend toutefois des abondances relatives : une hausse de la proportion de staphylocoques peut traduire une prolifération réelle ou le recul des autres bactéries. Les abondances absolues lèvent cette ambiguïté (Tang et al., 2020). La métagénomique séquence enfin tout l’ADN de l’échantillon. Elle descend à l’espèce, parfois à la souche, et décrit les fonctions des gènes (Whittle et al., 2024).
La peau porte peu de microbes en quantité. Un prélèvement est donc vite contaminé par les réactifs ou par l’environnement. Les protocoles de prélèvement et d’analyse varient d’une équipe à l’autre, ce qui rend les résultats difficiles à comparer. Les effectifs sont souvent petits, si bien qu’un écart réel peut ne pas atteindre la signification statistique (Older et Rodrigues Hoffmann, 2024). La variabilité entre individus, entre races et entre sites s’y ajoute. Enfin, une étude transversale montre une association, jamais le sens de la relation entre la dysbiose et la maladie.
Des laboratoires proposent aujourd’hui ce séquençage en diagnostic. Chez 24 chiens atteints de folliculite bactérienne superficielle, deux laboratoires de séquençage et un laboratoire de culture ont détecté Staphylococcus aussi souvent, sans différence de délai de rendu. Ils s’accordaient en revanche mal sur la résistance à la méticilline et sur la sensibilité à la plupart des antibiotiques. Le séquençage ne remplace donc pas encore la culture pour ces lésions (Smart et al., 2025).
2 Le microbiome cutané : du chien sain au chien atopique
2.1 Chez le chien sain
La peau du chien porte un microbiote riche et très variable d’un individu à l’autre. Dans une étude de 12 chiens sains, les régions poilues étaient plus riches et plus diverses que les muqueuses et les jonctions cutanéomuqueuses. Le phylum Pseudomonadota (ex-Proteobacteria) dominait sur tous les sites (Rodrigues Hoffmann et al., 2014). Chez un même chien, la peau poilue garde une composition semblable d’un site à l’autre. Les genres les plus fréquents sont Porphyromonas, Staphylococcus, Streptococcus, Cutibacterium et Corynebacterium, avec de fortes variations entre études (Rodrigues Hoffmann, 2022). Chez 6 chiens sains prélevés sur huit sites, Bacillota (ex-Firmicutes) dominait, avec une abondance relative moyenne de 34,4 %. Venaient ensuite Actinomycetota (ex-Actinobacteria), avec 32,2 %, Pseudomonadota, avec 16,4 %, et Bacteroidota (ex-Bacteroidetes), avec 8,7 % (Štempelová et al., 2025 ; Rodrigues Hoffmann, 2026). Le derme et l’hypoderme, en revanche, n’abritent pas de microbiote : sur 7 chiens sains, le séquençage des biopsies ne différait pas de celui des témoins vierges (García-Fonticoba et al., 2019). Les champignons de la peau saine sont surtout Alternaria et Cladosporium, venus de l’environnement, à côté de proportions variables de Malassezia (Meason-Smith et al., 2015).
Plusieurs facteurs façonnent cette composition. La race et le site de prélèvement sont les principaux dans une étude métagénomique de 72 chiens de quatre races (Whittle et al., 2024). Chez le chiot, la saison, la région, l’hygiène du foyer et l’accès à l’extérieur modifient la flore cutanée, qui diffère aussi de celle de l’adulte (Rodriguez-Campos et al., 2020). Les chiens d’un même foyer partagent un microbiote voisin (Rodrigues Hoffmann, 2022). Le microbiote cutané reflète aussi le milieu de vie et les habitudes du chien (Lehtimäki et al., 2018).
Malgré cette variabilité, un noyau commun existe. Chez les 72 chiens de l’étude métagénomique, ce noyau, dit microbiome « core », comprenait 230 taxons et 1 219 familles de gènes. Il était en outre enrichi en voies de synthèse de métabolites secondaires. Cette richesse suggère que le microbiome sain protège contre l’installation des pathogènes, par un mécanisme appelé résistance à la colonisation (Whittle et al., 2024). Un suivi mensuel de 15 chiens sains pendant cinq mois a retrouvé dans 70 % des prélèvements les staphylocoques à coagulase négative, Sphingomonas, Malassezia, Vishniacozyma victoriae et Cladosporium. Aucun de ces cinq organismes n’était toutefois présent chez tous les chiens à chaque visite (Harvey et Krumbeck, 2025). Ce noyau se reconstitue après une agression. Chez 60 chiens, un lavage a fait chuter la charge microbienne sous le seuil de détection, puis la flore est revenue en 7 à 28 jours par la repousse des taxons déjà présents, sans apport de taxons nouveaux (Whittle et al., 2026).
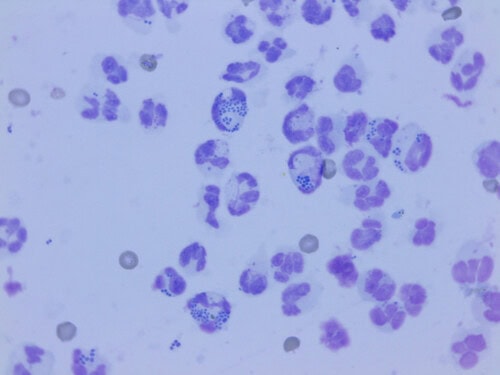
Images de phagocytose de coques chez un chien
2.2 Chez le chien atopique
La peau du chien atopique est moins diverse que celle du chien sain. Dès 2014, les 6 chiens allergiques d’une étude par séquençage avaient une richesse en espèces plus faible que les 12 chiens sains (Rodrigues Hoffmann et al., 2014). Chez 14 chiens atopiques suivis en poussée, la diversité bactérienne était diminuée par rapport à 16 témoins, au profit de Staphylococcus, surtout S. pseudintermedius, et de Corynebacterium (Bradley et al., 2016). Une étude plus large, par séquençage 16S de la peau, menée sur 44 chiens atopiques et 42 témoins de trois races, a retrouvé sur tous les sites et dans toutes les races un enrichissement en Staphylococcus, mais aussi en Capnocytophaga, en bactéries du groupe Rhizobium et en Aureimonas (Whittle et al., 2025).
La dysbiose est surtout nette pendant les poussées. Hors poussée et sans infection, chez 12 bergers allemands allergiques, seule l’aisselle était moins riche que chez 12 bergers sains (Apostolopoulos et al., 2021). De même, chez 3 chiens atopiques sans lésion, les staphylocoques étaient plus abondants que chez les témoins sur chaque site, sans que l’écart soit significatif. À l’aine, par exemple, ils atteignaient 36,50 % chez les atopiques contre 4,26 % chez les témoins (Chermprapai et al., 2019). Chez les chiens malades, la dysbiose ne se limite pas à un changement de proportions : la biomasse bactérienne et fongique est beaucoup plus élevée que sur la peau saine (Tang et al., 2020).
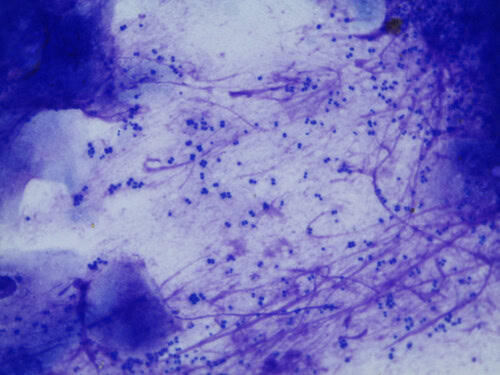
Chez le chien atopique, Staphylococcus pseudintermedius est la principale espèce isolée
2.3 Le mycobiome
Le mycobiome, c’est-à-dire la population fongique, change aussi chez le chien allergique. Chez 8 chiens allergiques, il était moins riche que chez 10 chiens sains. Tous les sites se regroupaient en outre selon le statut clinique (Meason-Smith et al., 2015). Le changement porte surtout sur les espèces de Malassezia. Malassezia globosa était significativement plus abondante sur la peau saine que sur celle des chiens allergiques, en séquençage comme en PCR quantitative. Malassezia restricta y était aussi significativement plus abondante en séquençage. Malassezia pachydermatis était au contraire significativement plus abondante, en séquençage, sur la peau des chiens naturellement allergiques. Chez des chiens sensibilisés expérimentalement, elle était aussi plus abondante, en PCR quantitative, dans les lésions provoquées (Meason-Smith et al., 2020). Les populations de Malassezia ne se modifiaient pourtant pas au rythme de l’apparition des lésions provoquées. On ne sait donc pas si la prolifération de M. pachydermatis précède les lésions ou les suit. Les espèces commensales et M. pachydermatis diffèrent par leur dépendance aux lipides, ce qui suggère un rôle de la composition lipidique de la peau dans le changement de communauté (Meason-Smith et al., 2020).
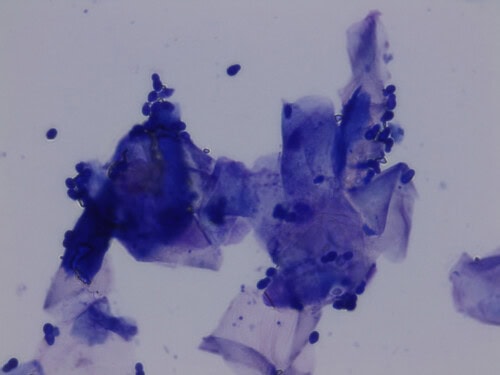
Malassezia pachydermatis est la levure la plus fréquemment isolée chez les chiens allergiques
2.4 Cause ou conséquence ?
Le modèle expérimental montre que la dysbiose peut suivre l’allergie. Chez 8 chiens sensibilisés aux acariens, une provocation sur l’aine droite a fait apparaître des lésions chez tous les chiens. Au site provoqué, Corynebacteriaceae augmentait dès le premier jour, puis Staphylococcaceae du septième au vingt et unième jour. La PCR quantitative confirmait une hausse de S. pseudintermedius aux septième et vingt et unième jours par rapport au côté opposé (Pierezan et al., 2016).
La dysbiose est aussi liée à l’état de la barrière cutanée. Chez les 14 chiens atopiques suivis, la diversité bactérienne était corrélée à la perte insensible en eau et au pH de la peau, mais pas à l’hydratation mesurée par cornéométrie. Le traitement antimicrobien a restauré la diversité, fait reculer les staphylocoques et normalisé la perte insensible en eau et le pH. La sévérité clinique diminuait dans le même temps (Bradley et al., 2016). Chez l’homme, les cytokines Th2, en particulier l’IL-4 et l’IL-13, inhibent les défenses de la peau. La dysbiose humaine est donc à la fois une conséquence de l’inflammation et un facteur qui l’entretient. Chez le chien, la prolifération de S. pseudintermedius contribue de même à entretenir l’inflammation (Mosca, 2026). La peau atopique retient aussi davantage le staphylocoque. Dans des études qui parlaient encore de Staphylococcus intermedius, les bactéries adhéraient davantage aux cornéocytes des chiens atopiques qu’à ceux des chiens sains, et d’autant plus que le prurit était intense (Simou et al., 2005). Cette adhérence accrue s’observait sur la peau atopique enflammée comme sur la peau d’apparence normale (McEwan et al., 2006). Elle tient surtout à l’hôte : les isolats de chiens atopiques et de chiens sains se fixaient de la même façon aux protéines de la matrice (Schmidt et al., 2009). De même, les cornéocytes de chiens porteurs persistants retenaient en moyenne trois fois plus de bactéries que ceux des autres chiens (Paul et al., 2013).
À l’inverse, la dysbiose peut elle-même déclencher l’inflammation. Chez la souris dépourvue de la protéine ADAM17 dans l’épiderme, une dysbiose apparaissait spontanément, avec l’émergence successive de Corynebacterium mastitidis, de Staphylococcus aureus et de Corynebacterium bovis. Des antibiotiques ciblés sur ces bactéries ont presque entièrement supprimé la dysbiose et l’inflammation cutanée. Staphylococcus aureus entraînait la formation de l’eczéma, tandis que C. bovis induisait une forte réponse Th2 (Kobayashi et al., 2015). Ce modèle murin n’a pas d’équivalent chez le chien.
La flore des premières semaines ne prédit pas la maladie. Dans une cohorte de 143 West Highland white terriers, dont 109 chiots âgés de trois semaines au plus, le microbiote cutané précoce ne prédisposait pas au développement ultérieur de la dermatite atopique (Rodriguez-Campos et al., 2020). Chez le chien, les données disponibles placent donc la dysbiose cutanée surtout en aval de l’inflammation, comme un facteur aggravant plutôt que comme une cause première.
2.5 De la dysbiose à la pyodermite superficielle
Les lésions de pyodermite superficielle portent une dysbiose staphylococcique marquée. Chez des chiens atopiques, 12 lésions de folliculite bactérienne superficielle et 9 collerettes épidermiques étaient beaucoup moins diverses que la peau de chiens sains. Staphylococcus y était plus abondant, surtout dans les collerettes, et S. pseudintermedius était l’espèce staphylococcique principale dans tous les types de prélèvements (Older et al., 2020).
3 Le microbiome auriculaire : du chien sain à l’otite
3.1 L’oreille saine
Le cérumen du chien sain abrite une communauté bactérienne très variable, dominée par Pseudomonadota, Actinomycetota, Bacillota, Bacteroidota et Fusobacteria (Borriello et al., 2020). L’oreille saine est un peu moins diverse que la peau, et elle porte de faibles quantités absolues d’ADN microbien. Les organismes les plus fréquents y sont S. pseudintermedius, M. pachydermatis, Corynebacterium auriscanis et Enterococcus faecalis (Rodrigues Hoffmann, 2026). La flore fongique de l’oreille saine est dominée par les ascomycètes et compte des moisissures de l’environnement comme Alternaria, Cladosporium et Epicoccum (Prélaud, 2022).
3.2 L’oreille du chien atopique sans otite
La dysbiose atteint l’oreille avant toute otite clinique. Chez 11 chiens atopiques sans signe d’otite, le microbiote auriculaire était déséquilibré par rapport à 9 chiens sains. Staphylococcus et Ralstonia étaient plus abondants chez les chiens atopiques, Escherichia chez les chiens sains. Ce profil restait stable sur vingt-huit jours (Ngo et al., 2018). Chez les bergers allemands allergiques, le conduit auditif différait lui aussi de celui des bergers sains (Apostolopoulos et al., 2021). Chez le chien allergique, la diversité auriculaire baisse encore pendant les poussées, à la faveur de Staphylococcus et de Malassezia (Rodrigues Hoffmann, 2026).
3.3 L’otite externe
L’otite externe réduit fortement la diversité du conduit auditif. La diversité alpha correspond à la diversité au sein de chaque prélèvement. Chez 18 chiens atteints, elle était nettement diminuée par rapport à 8 chiens sains. Les deux groupes différaient par 153 unités taxonomiques (Korbelik et al., 2019). Chez 23 chiens atteints, la diversité baissait aussi, avec une hausse de Bacillota et de Staphylococcus. La sévérité de l’otite ne modifiait toutefois pas le profil (Kasai et al., 2021). Staphylococcus était le genre le plus abondant chez 30 chiens atteints comme chez 10 chiens sains. Les oreilles riches en cocci étaient les moins diverses, et toutes les formes d’otite s’accompagnaient d’une diversité fongique réduite (Bradley et al., 2020). Sur 129 prélèvements d’oreilles atteintes, 69,8 % présentaient une prolifération bactérienne, 16,3 % une prolifération fongique et 7,0 % les deux (Tang et al., 2020). Une étude métagénomique de 100 chiens atteints et 100 chiens sains a confirmé la place prépondérante de S. pseudintermedius dans l’otite externe : il représentait 38,7 % de l’abondance relative dans les oreilles atteintes. Dans les oreilles saines dominaient Bacteroides fragilis, avec 15,8 %, et Ezakiella coagulans, avec 8,2 % (Karakaya et al., 2026). Dans 6 otites fongiques, Malassezia représentait enfin 55,7 à 98,4 % des séquences fongiques, avec une médiane de 96,8 %. La richesse fongique y était nettement plus faible que dans 5 oreilles saines (Korbelik et al., 2018).
3.4 La dysbiose fongique après antibiothérapie auriculaire
Le traitement antibactérien d’une otite favorise la prolifération de Malassezia, car il supprime les bactéries qui occupaient le conduit. Chez 25 chiens traités localement par une fluoroquinolone ou par l’association pipéracilline et tazobactam, les numérations bactériennes ont chuté significativement, jusqu’à une médiane nulle. Mais les numérations de M. pachydermatis ont augmenté significativement dans les deux groupes. Candida a en outre été isolé chez 2 chiens après le traitement (Juhola et al., 2023). Dans une seconde série de 15 chiens atteints d’otite à bactéries Gram négatif, l’ajout de clotrimazole a réduit le risque de dysbiose fongique : 6 chiens sur 15 l’ont développée, contre 14 sur 14 dans une série antérieure traitée par pipéracilline et tazobactam seuls (Gallow et al., 2025). Le clotrimazole réduit donc cette dysbiose sans l’abolir (Gallow et al., 2025). Après une antibiothérapie auriculaire réussie, la prolifération des levures doit donc être surveillée (Juhola et al., 2023).
4 L’axe intestin-peau
4.1 Mécanismes proposés et données canines
L’axe intestin-peau désigne l’influence du microbiote digestif sur la peau. En dégradant les fibres, les bactéries intestinales produisent des acides gras à chaîne courte (AGCC), qui régulent l’immunité et renforcent la barrière intestinale. Une dysbiose intestinale pourrait donc agir sur la peau de plusieurs façons : par une perméabilité accrue de l’intestin, par le passage de métabolites ou de toxines dans la circulation, par une différenciation altérée des lymphocytes T, ou par une moindre production de peptides antimicrobiens cutanés (Rodrigues Hoffmann, 2024). Trois voies sont retenues comme principales : les AGCC, les métabolites du tryptophane et les motifs moléculaires microbiens reconnus par les récepteurs Toll. Ces mécanismes ont été démontrés en recherche fondamentale chez d’autres espèces, mais l’axe intestin-peau reste mal connu chez le chien (Rostaher, 2026a).
Les concentrations fécales d’acides acétique, propionique et butyrique étaient significativement plus basses chez 25 chiens atopiques que chez 27 chiens sains (Gonçalves et al., 2026). Chez 30 chiens atopiques classés selon la sévérité, deux marqueurs de la paroi intestinale diminuaient à mesure que la dermatite s’aggravait : la diamine oxydase et la zonuline. La zonuline passait ainsi de 14,67 à 10,89 ng/mL entre les formes légères et sévères (Ural et al., 2026). Chez 8 chiens atteints à la fois de dermatite atopique et de réaction alimentaire, comparés à 9 témoins, la diversité bactérienne fécale était réduite. Les principaux AGCC diminuaient, tandis que les médiateurs lipidiques issus des lipoxygénases augmentaient (Hayashi et al., 2026). Ces trois études sont des travaux pilotes, sans suivi dans le temps.
4.2 Le microbiote intestinal du chien atopique
Les études qui comparent le microbiote intestinal des chiens atopiques et des chiens sains aboutissent à des résultats discordants (Tableau 1). Certaines trouvent une diversité plus faible chez les atopiques, d’autres une diversité semblable. Une dernière trouve une diversité plus élevée, interprétée comme une instabilité du microbiote (So Severo et al., 2026). Les genres en cause changent aussi d’une étude à l’autre.
Tableau 1. Microbiote intestinal des chiens atopiques comparé à celui des chiens sains.
| Étude | Population | Méthode | Résultat principal |
|---|---|---|---|
| Rostaher et al., 2022 | 3 beagles atopiques, 4 sains | 16S | Diversité plus faible chez les atopiques ; Lachnospiraceae, Anaerovoracaceae et Oscillospiraceae plus abondants chez les sains ; différences stables à un mois |
| Uchiyama et al., 2022 | Colonie de shiba : 9 atopiques, 16 sains | 16S | Diversité intestinale semblable ; Anaerovoracaceae associé à la dermatite |
| Thomsen et al., 2023 | Shiba atopiques et sains | 16S | Escherichia/Shigella et Clostridium sensu stricto abondants chez les atopiques ; Fusobacteria et Megamonas réduits |
| Sugita et al., 2023 | 12 atopiques, 20 sains | 16S | Composition significativement différente |
| Sinkko et al., 2023 | Labradors et chiens finnois de Laponie de propriétaires | Non précisée | Composition différente ; sévérité liée aux antibiotiques reçus |
| Felten et al., 2025 | 12 WHWT allergiques, 9 sains | Métagénomique | Aucune différence ; abondance d’Escherichia coli inversement corrélée au prurit |
| Song et al., 2025 | 23 atopiques, 11 sains | 16S | Diversité plus faible ; sévérité inversement corrélée à la diversité et à Fusobacterium et Megamonas |
| Whittle et al., 2025 | 44 atopiques, 42 sains, trois races | Métagénomique | Enrichissement en Escherichia, profil proche de l’entéropathie chronique |
| So Severo et al., 2026 | 35 atopiques, 15 sains | 16S, écouvillon rectal | Diversité plus élevée chez les atopiques ; Peptacetobacter hiranonis moins fréquent |
Ces divergences tiennent en partie aux populations étudiées. La race, l’alimentation, le lieu de vie et les traitements reçus diffèrent selon les études, et les effectifs restent faibles. Chez des chiens finlandais, l’alimentation était le facteur le plus lié au microbiote intestinal, mais elle n’était que faiblement liée aux symptômes. La sévérité, elle, était associée aux antibiotiques reçus. Ces antibiotiques étaient eux-mêmes liés à la composition du microbiote (Sinkko et al., 2023).
4.3 Alimentation et microbiote intestinal
Le régime modifie le microbiote intestinal du chien allergique. Chez 40 chiens recevant pendant huit semaines un régime hydrolysé à base de poisson et d’amidon de riz, les bactéries productrices d’AGCC ont augmenté chez tous les chiens. Les chiens classés comme atopiques parce qu’ils ne répondaient pas au régime gardaient un profil différent de celui des chiens allergiques alimentaires, avant comme après l’essai alimentaire (Noli et al., 2023). Chez 32 chiens atopiques, l’association d’un nutraceutique à un régime hypoallergénique a abaissé l’indice de dysbiose intestinale ainsi que les scores de lésions et de prurit. Cette étude n’avait toutefois pas de groupe témoin (Guidi et al., 2021).
5 La fenêtre précoce
5.1 Environnement, mode de vie et premiers mois
L’hypothèse de l’hygiène et celle de la biodiversité relient la baisse de l’exposition microbienne précoce à la hausse des maladies allergiques. Elles reposent sur l’idée que des microbes divers « éduquent » le système immunitaire pendant une fenêtre précoce de la vie (Rostaher, 2026a). Chez le chien, les données épidémiologiques vont dans ce sens. Dans une enquête nationale finlandaise portant sur 5 722 chiens, les symptômes allergiques étaient plus fréquents en milieu urbain, chez les chiens comme chez leurs propriétaires. Une grande famille et un contact régulier avec les animaux de ferme et d’autres animaux protégeaient contre ces symptômes (Hakanen et al., 2018). Cette fenêtre s’ouvre dès la naissance. Chez 18 chiots bouledogues français nés par césarienne, la richesse et la diversité des microbiotes buccal et rectal augmentaient de la naissance au sevrage. La peau des mamelles de la mère était leur première source de microbes, avant que les flores buccale et rectale maternelles prennent le relais (Cicirelli et al., 2026). Chez 169 chiens de deux races, l’allergie était la plus fréquente chez les chiens urbains vivant avec une seule personne et sans contact avec d’autres animaux. Elle était la plus rare chez les chiens ruraux au mode de vie inverse (Lehtimäki et al., 2018). Sur 168 paires de chiens et de propriétaires, la vie urbaine homogénéisait le microbiote cutané des deux espèces, qui en partageaient une partie. Les bactéries associées à l’allergie différaient toutefois chez le chien et chez l’homme (Lehtimäki et al., 2020).
L’alimentation du chiot s’ajoute à ces facteurs. Dans une enquête de 1 158 cas et 2 864 témoins, la consommation de tripes crues ou d’abats crus chez le chiot était associée à moins de signes allergiques après un an : rapport de cotes de 0,36 pour les tripes crues et de 0,23 pour les abats crus (Hemida et al., 2021). Cette étude repose sur des questionnaires, donc elle montre une association et non une cause. L’usage précoce d’antibiotiques figure aussi parmi les facteurs de risque retenus (Rostaher, 2026a).
5.2 Tolérance et lymphocytes T régulateurs
Les lymphocytes T régulateurs (Treg) assurent la tolérance aux antigènes de l’environnement et aux commensaux. Chez la souris, une vague de Treg gagne la peau juste après la naissance et installe la tolérance à la flore cutanée (Rodrigues Hoffmann, 2024). Chez le chien, dans une cohorte de West Highland white terriers, les futurs chiens sains avaient à trois mois une proportion de Treg sanguins plus élevée que les futurs chiens atopiques : 4,5 % contre 3,3 % (Rostaher et al., 2021).
5.3 Interventions précoces dans le modèle expérimental
Le modèle du beagle à IgE élevées repose sur une colonie de beagles qui produisent beaucoup d’IgE. Sensibilisés aux acariens par voie cutanée, ces chiens développent une dermatite proche de la maladie naturelle sur les plans clinique, histologique et immunologique (Marsella et al., 2006). Ce modèle a permis de tester une intervention précoce. Une chienne atopique a reçu Lactobacillus rhamnosus GG pendant sa seconde gestation, puis ses chiots l’ont reçu de trois semaines à six mois. Les deux portées de la chienne, la première non traitée et la seconde traitée, ont ensuite été sensibilisées à Dermatophagoides farinae. À six mois, la portée traitée avait des IgE spécifiques plus basses et des réactions intradermiques plus faibles que la portée non traitée. Les scores cliniques ne différaient pas entre les deux portées, et 6 des 9 chiots traités ont tout de même développé une dermatite après provocation (Marsella, 2009). Trois ans après l’arrêt du probiotique, les scores cliniques à la provocation restaient plus bas chez les 9 chiens exposés que chez les 7 non exposés, alors que les IgE spécifiques ne différaient plus (Marsella et al., 2012). L’exposition précoce n’a pas modifié l’expression de la filaggrine, une protéine de la barrière, dans ce modèle (Marsella et al., 2013).
Une transplantation de microbiote fécal a aussi été essayée chez le chiot. Des chiots beagles ont été sensibilisés aux acariens après l’un de trois traitements : aucun, du métronidazole ou une transplantation fécale. Les chiots non traités ou traités par l’antibiotique avaient des IgE et des scores de prurit plus élevés que les chiots transplantés. Ces résultats préliminaires, issus d’un travail de Chapman et al. non publié, n’ont été présentés qu’en congrès (Rostaher, 2026a). La prévention de la dermatite atopique n’est donc plus une idée purement théorique, mais les preuves restent limitées (Rostaher, 2026b).
6 Traitements et modulation du microbiome
6.1 Impact des antimicrobiens et des lavages
Les études sur les antibiotiques restent courtes, et leurs effets à long terme sur le microbiome du chien ne sont pas connus (Rodrigues Hoffmann, 2022).
Les shampooings antiseptiques ont un effet transitoire. Chez 3 chiens atopiques et 6 chiens sains, un shampooing à la chlorhexidine 2 % et au miconazole 2 %, appliqué deux fois par semaine pendant trois semaines, n’a pas modifié significativement la diversité. La diversité bactérienne de la peau atopique tendait à augmenter pendant le traitement, puis revenait à son niveau initial quatre semaines après l’arrêt (Chermprapai et al., 2019). Le lavage répété modifie aussi la flore du chien sain. Chez 16 labradors lavés chaque jour pendant quatorze jours avec un détergent dilué, la diversité a augmenté, tandis que les phylums habituellement dominants reculaient (Discepolo et al., 2023). Chez 20 chiens atopiques porteurs de zones de dysbiose, des lingettes à la chlorhexidine 3 %, appliquées une fois par jour pendant quatorze jours, ont réduit les scores cliniques et les numérations cytologiques dès le septième jour, sans analyse du microbiome ni groupe témoin (Bensignor et al., 2024).
Dans l’oreille, le choix du traitement modifie le microbiome. Chez 20 chiens atteints d’otite externe, une formulation sans antibiotique et l’association gentamicine, bétaméthasone et clotrimazole ont donné la même guérison clinique. L’association conventionnelle a toutefois fait proliférer Neisseria dumasiana, alors que la formulation sans antibiotique ne modifiait aucun taxon (Charello Bannach et al., 2026). Chez 30 chiens atteints d’otite érythémato-cérumineuse à Malassezia, un nettoyant céruminolytique a réduit le prurit de 77 % et le score clinique de 66 % en quatorze jours. Il a augmenté la diversité fongique sans modifier nettement la flore bactérienne (Briand et al., 2025).
6.2 Impact des anti-inflammatoires
Six chiens atopiques sans lésion ont reçu de la ciclosporine pendant un mois puis de la prednisone pendant un mois, séparés par un mois sans traitement. Ni la diversité ni la composition du microbiote bactérien, ni les populations de Malassezia n’ont changé (Widmer et al., 2018). Pour l’oclacitinib, les deux études disponibles divergent. Chez des shiba atopiques, l’oclacitinib a rapproché la composition des microbiotes cutané et intestinal de celle des chiens sains (Thomsen et al., 2023). Chez 3 beagles atopiques, quatre semaines d’oclacitinib n’ont pas modifié le microbiote intestinal (Rostaher et al., 2022). Dans les sacs anaux, le microbiote de 14 chiens atopiques non traités différait de celui de 15 chiens sains. Chez 6 chiens atopiques traités par oclacitinib, desloratadine ou immunothérapie spécifique, sa structure se rapprochait au contraire de celle des chiens sains (Bergeron et al., 2024).
Les corticoïdes locaux ne déséquilibrent pas l’oreille. Chez 10 chiens atopiques sans otite, la mométasone appliquée dans une seule oreille pendant quatre semaines n’a pas modifié la diversité bactérienne ou fongique par rapport à l’oreille non traitée, alors que les scores cliniques et cytologiques de l’oreille traitée s’amélioraient (Léonard et al., 2021). Chez 15 chiens atteints d’otite non purulente, la prednisolone, associée à la grenade dans un groupe et à des antimicrobiens dans l’autre, a réduit significativement les signes cliniques aux quinzième et trentième jours. La diversité fongique a augmenté après les deux traitements, par recul des Malasseziaceae (Puigdemont et al., 2021 ; Rodrigues Hoffmann, 2026). Chez 5 beagles atteints d’otite érythémateuse légère, un spray d’acéponate d’hydrocortisone a fait reculer pendant quatorze jours les genres associés à la dysbiose, notamment Escherichia–Shigella, Moraxella et Macrococcus. La diversité baissait alors transitoirement, puis se rétablissait après quatorze jours sans traitement (Ghibaudo et al., 2026). Cette dernière étude pilote a été financée par le fabricant.
6.3 Pro-, post- et synbiotiques oraux
Les essais de probiotiques et de postbiotiques oraux chez le chien atopique sont nombreux, mais petits et hétérogènes (Tableau 2). Chaque essai teste une souche différente, à une dose et pendant une durée différentes, si bien que leurs résultats ne s’additionnent pas.
Tableau 2. Essais cliniques de probiotiques, postbiotiques et synbiotiques oraux dans la dermatite atopique canine.
| Étude | Produit | Plan | Effectif | Résultat |
|---|---|---|---|---|
| Kim et al., 2015 | Lactobacillus sakei Probio-65 | Contre placebo, 2 mois | Non précisé | Indice de sévérité réduit |
| Ohshima-Terada et al., 2015 | Lactobacillus paracasei K71 | Contre cétirizine, 12 semaines | 41 | Lésions et prurit voisins ; score médicamenteux réduit |
| Osumi et al., 2019 | Enterococcus faecalis FK-23 inactivé | Contre placebo, 84 jours | 39 | CADESI-04 réduit ; prurit et médicaments inchangés |
| Yamazaki et al., 2019 | Enterococcus faecium SF68, avec oclacitinib | Contre placebo, 12 semaines | 21 | Aucune réduction de dose de l’oclacitinib |
| Kawano et al., 2023 | L. paracasei M-1 et kestose (synbiotique) | Ouvert, 90 jours, chiens sous prednisolone | 15 | CADLI médian de 28 à 12 ; prurit médian de 6 à 2 ; dose totale de prednisolone réduite |
| Tate et al., 2024 | Probiotiques et nutraceutiques | Contre placebo, 10 semaines, chiens prurigineux | 62 analysés | Amélioration plus rapide ; effet placebo net |
| Cardoso et al., 2025 | L. rhamnosus GG, avec oclacitinib | Contre placebo, 90 jours | 40 | CADESI-04 réduit ; prurit amélioré dans le seul groupe traité |
| Song et al., 2025 | Probiotique à trois souches | Ouvert, sans groupe atopique non traité, 16 semaines | 23 | Sévérité réduite ; hausse de la diversité intestinale chez les bons répondeurs |
| Kiewsiri et al., 2026 | Lactobacillus plantarum L-137 inactivé, avec oclacitinib | Croisé contre placebo, 12 semaines | 12 | Prurit et CADESI-04 non améliorés significativement ; CCL17 sérique réduite ; microbiote fécal inchangé |
Les méta-analyses ne confirment pas d’effet net. Une revue systématique, limitée aux articles en anglais des années 2019 à 2023, n’a retenu que 5 essais. Dans ces essais, les probiotiques, oraux ou topiques, ne modifiaient significativement ni le CADESI-04, score de l’étendue et de la sévérité des lésions, ni le score de prurit (Pacheco et al., 2025). Une méta-analyse des postbiotiques chez le chien, toutes indications confondues, fondée sur 13 études in vivo, n’a montré aucune différence significative avec les groupes témoins sur les critères analysés. Les études retenues avaient de petits effectifs, des souches hétérogènes et des plans d’étude variés (Bonel-Ayuso et al., 2025). Un probiotique oral peut tout de même modifier la peau à distance : chez 12 golden retrievers sains, quatre-vingt-dix jours de supplémentation ont réduit la fréquence de S. pseudintermedius à l’aine et accru la diversité bactérienne de l’aisselle (Grant et al., 2025).
6.4 Bactéries topiques et bactériothérapie ciblée
Chez 10 chiens atopiques légèrement atteints, un spray de Lactobacillus rhamnosus et de Lactobacillus reuteri inactivés par la chaleur a été appliqué chaque jour pendant vingt-huit jours. Il a réduit le score clinique dès le quatorzième jour et le prurit au quarante-deuxième jour. Le microbiote cutané n’a pourtant pas changé à vingt-huit jours (Santoro et al., 2021). Un spray de deux souches vivantes, Lactiplantibacillus plantarum YUN-V2.0 et Lacticaseibacillus rhamnosus YUN-S1.0, a réduit le score clinique chez 7 chiens allergiques légers, sans modifier le prurit (Santoro, 2025 ; Mueller et al., 2026). Dans l’oreille, des gouttes contenant ces deux souches persistaient une semaine dans le conduit de chiens sains et inhibaient in vitro P. aeruginosa, S. pseudintermedius et M. pachydermatis (Claes et al., 2025). Chez 37 chiens atteints d’otite érythémato-cérumineuse non infectée, des gouttes auriculaires probiotiques appliquées tous les deux jours pendant vingt-huit jours ont fait baisser le score lésionnel moyen de 5,11 à 1,66 et le prurit de 4,93 à 2,09. L’essai était ouvert, sans groupe témoin (Carrasco et al., 2026). Ces trois dernières études ont été menées avec le soutien du fabricant ou par ses salariés.
La bactériothérapie ciblée cherche des commensaux qui tuent le pathogène. Une souche de Staphylococcus felis isolée de la peau du chat, la souche C4, sécrète une bactériocine, la micrococcine P1, et des peptides antimicrobiens. Chez la souris, elle a réduit la colonisation cutanée par S. pseudintermedius résistant à la méticilline (SPRM), et un extrait de ses antimicrobiens a réduit les lésions nécrotiques qu’il provoque (O’Neill et al., 2021). Sur un explant de peau canine, la bactérie vivante et son produit protéique stérile ont réduit la croissance d’une souche sensible et d’une souche résistante à la méticilline. Vingt-quatre heures après l’application du produit stérile, aucun germe n’était retrouvé (Faccin et al., 2025). Un Lactobacillus casei isolé du pavillon de chiens sains a inhibé in vitro les 30 isolats cliniques de S. pseudintermedius testés (Diniz et al., 2025). Un bactériophage spécifique de S. pseudintermedius, appliqué chaque jour pendant trente jours, a guéri une pyodermite superficielle généralisée à SPRM chez un chien (Mota Sá et al., 2025). Ces approches restent au stade du laboratoire ou du cas isolé.
6.5 Transplantation de microbiote fécal
La transplantation de microbiote fécal consiste à apporter le microbiote intestinal d’un donneur sain. Dans un essai ouvert, une transplantation orale unique chez 12 chiens atopiques a abaissé le CADESI-04 médian de 16,5 à 8 et le score de prurit de 3 à 1 en cinquante-six jours. Elle a aussi modifié la composition du microbiote fécal (Sugita et al., 2023). Un essai randomisé en double aveugle contre placebo a ensuite inclus 46 chiens. Parmi eux, 40 sont allés au bout de l’essai, 20 par groupe. Le groupe transplanté recevait chaque jour des gélules de microbiote lyophilisé pendant quatre-vingt-dix jours et trois administrations rectales mensuelles. Le CADESI-04 était plus bas sous transplantation que sous placebo au deuxième mois (7 contre 16) et au troisième (8 contre 15). Les répondeurs durables étaient plus fréquents sous transplantation : 35 % contre 5 % sous placebo. Ils étaient définis par une amélioration d’au moins 50 % aux deux contrôles. Au troisième mois, les scores médicamenteux étaient de 13 sous transplantation contre 24 sous placebo. Le prurit a baissé dans les deux groupes, sans différence entre eux. La transplantation a été bien tolérée (Felten et al., 2026). Ce résultat repose toutefois sur un seul essai contrôlé.
6.6 Recommandations ICADA 2026
Le comité international ICADA a intégré la modulation du microbiome à ses recommandations de 2026. Il classe la force de ses recommandations de A à D. Le niveau A repose sur des essais concordants, le niveau B sur au moins un essai randomisé, le niveau C sur des études descriptives et le niveau D sur l’avis d’experts. Il retient deux mécanismes, démontrés in vitro : la compétition des bactéries bénéfiques avec les pathogènes et la production de substances tolérogènes par les cellules de l’hôte. Les preuves sont jugées limitées pour recommander les probiotiques oraux dans le traitement ou la prévention de la dermatite atopique (force B). Les produits topiques contenant des bactéries vivantes ou tyndallisées sont considérés comme sûrs et efficaces dans les formes légères (force C), mais rien ne montre qu’ils modifient le microbiome cutané (force B). Le comité propose donc la modulation du microbiome comme une option, en poussée ou en entretien proactif chez le chien peu atteint. Les bénéfices de cette modulation sont toutefois à mettre en balance avec une efficacité inconstante. Il rappelle que toute infection récidivante est secondaire à une cause sous-jacente et que les cures répétées d’antibiotiques ou d’antifongiques doivent être évitées (Mueller et al., 2026). Les recommandations ne mentionnent pas la transplantation fécale, dont l’essai contrôlé est paru la même année.
Conclusion
La dysbiose cutanée et auriculaire du chien atopique est aujourd’hui bien établie. Elle associe une perte de diversité, une prolifération de S. pseudintermedius et de M. pachydermatis et une hausse de la biomasse microbienne. Elle suit l’inflammation allergique dans le modèle expérimental, s’aggrave en poussée et régresse avec le traitement. C’est donc un facteur d’entretien plutôt qu’une cause première démontrée. L’axe intestin-peau reste en revanche une hypothèse chez le chien, car les études du microbiote intestinal se contredisent et les mécanismes n’ont été démontrés que chez d’autres espèces. Les facteurs précoces (vie urbaine, alimentation du chiot, antibiotiques) sont associés au risque de dermatite atopique. Une exposition précoce aux probiotiques a eu des effets durables dans le modèle du beagle, chez les chiots d’une seule chienne. Sur le plan thérapeutique, les probiotiques oraux n’ont pas démontré d’effet net. Les bactéries topiques améliorent les formes légères sans modifier le microbiome. La transplantation fécale a réduit les lésions et les traitements dans un seul essai contrôlé. Les recommandations actuelles restent de traiter les infections en recherchant leur cause et d’éviter les cures répétées d’antibiotiques (Mueller et al., 2026).
Points à retenir
- Dans le modèle expérimental, la dysbiose cutanée peut suivre l’inflammation allergique ; chez le chien atopique, elle est surtout marquée pendant les poussées et régresse sous traitement antimicrobien.
- Une infection qui récidive a toujours une cause sous-jacente à rechercher, et les cures répétées d’antibiotiques ou d’antifongiques sont à éviter.
- Chez le chien atopique, la ciclosporine, la prednisone et la mométasone auriculaire n’ont pas modifié la diversité du microbiome.
- Un antibiotique local dans l’oreille favorise la multiplication des Malassezia ; y associer du clotrimazole limite ce risque sans le supprimer.
- Un shampooing à la chlorhexidine et au miconazole n’a pas modifié significativement la diversité du microbiome cutané, qui était revenue à son niveau de départ quatre semaines après l’arrêt.
- Quelques essais de probiotiques oraux sont positifs, mais les méta-analyses ne montrent pas d’effet net sur les lésions ni sur le prurit.
- Selon les recommandations internationales, les produits locaux contenant des bactéries sont considérés comme sûrs et efficaces dans les formes légères, mais rien ne montre qu’ils modifient le microbiome cutané.
- La transplantation de microbiote fécal, à partir des selles d’un donneur sain, a réduit les lésions et le besoin de médicaments, sans différence sur le prurit, dans un seul essai contrôlé.
- La vie en ville, le peu de contacts avec d’autres personnes et d’autres animaux, et les antibiotiques précoces sont associés à un risque accru d’allergie, mais les preuves qu’on puisse prévenir la maladie restent limitées.
Références
Apostolopoulos N, Glaeser SP, Bagwe R, Janssen S, Mayer U, Ewers C, et al. Description and comparison of the skin and ear canal microbiota of non-allergic and allergic German shepherd dogs using next generation sequencing. PLoS One. 2021;16(5):e0250695. doi:10.1371/journal.pone.0250695
Bensignor E, Navarro C, Gard C, Jahier B, Pressanti C, Videmont E. Efficacy of Chlorhexidine Impregnated Wipes for the Local Dysbiosis in Atopic Dogs: A Multicentric Prospective Study. Vet Sci. 2024;11(6). doi:10.3390/vetsci11060240
Bergeron C, Costa MC, Segura M, de Souza LB, Bleuzé M, Sauvé F. Bacterial microbiota and proinflammatory cytokines in the anal sacs of treated and untreated atopic dogs: Comparison with a healthy control group. PLoS One. 2024;19(5):e0298361. doi:10.1371/journal.pone.0298361
Bonel-Ayuso DP, Pineda-Pampliega J, Martinez-Alesón García P, Fernandez-Muela M, de la Fuente J, Garcia Fernandez PM, et al. Effects of Postbiotic Administration on Canine Health: A Systematic Review and Meta-Analysis. Microorganisms. 2025;13(7). doi:10.3390/microorganisms13071572
Borriello G, Paradiso R, Catozzi C, Brunetti R, Roccabianca P, Riccardi MG, et al. Cerumen microbial community shifts between healthy and otitis affected dogs. PLoS One. 2020;15(11):e0241447. doi:10.1371/journal.pone.0241447
Bradley CW, Lee FF, Rankin SC, Kalan LR, Horwinski J, Morris DO, et al. The otic microbiota and mycobiota in a referral population of dogs in eastern USA with otitis externa. Vet Dermatol. 2020;31(3):225-e49. doi:10.1111/vde.12826
Bradley CW, Morris DO, Rankin SC, Cain CL, Misic AM, Houser T, et al. Longitudinal Evaluation of the Skin Microbiome and Association with Microenvironment and Treatment in Canine Atopic Dermatitis. J Invest Dermatol. 2016;136(6):1182-1190. doi:10.1016/j.jid.2016.01.023
Briand A, Bensignor E, Dropsy H, Crosaz O, Humeau L, Cheval J, et al. Effect of a ceruminolytic ear cleaner on clinical, microbiological and ear canal microbiome evolution in canine erythemato-ceruminous otitis externa associated with proliferation of Malassezia yeasts. Vet Dermatol. 2025;36(5):668-678. doi:10.1111/vde.13352
Cardoso MC, Lopes TS, Lemos MC, Figueiredo CD, Streck AF. Efficacy of Lacticaseibacillus rhamnosus GG in the treatment of canine atopic dermatitis: A randomized controlled study. Braz J Microbiol. 2025;56(4):3081-3084. doi:10.1007/s42770-025-01767-x
Carrasco I, Homedes J, Arcas A, Beasley S, Salichs M. Clinical Efficacy of Probiotic-Based Ear Drops Containing Lactobacilli in Canine Erythroceruminous Otitis Externa: An Open Label, Multicentre Study. Vet Dermatol. 2026;37(5):818-826. doi:10.1111/vde.70097
Charello Bannach T, Mongruel A, Voi R, Farias M, Luciano F. Auricular microbiome responses to topical antibiotic-free versus conventional therapy in canine otitis externa. In: Proceedings of the 36th European Veterinary Dermatology Congress; 2026 Aug 27-29; Lille, France. p. 137.
Chermprapai S, Ederveen THA, Broere F, Broens EM, Schlotter YM, van Schalkwijk S, et al. The bacterial and fungal microbiome of the skin of healthy dogs and dogs with atopic dermatitis and the impact of topical antimicrobial therapy, an exploratory study. Vet Microbiol. 2019;229:90-99. doi:10.1016/j.vetmic.2018.12.022
Cicirelli V, Peruzzo A, Burgio M, Bramante G, Fabbri G, Toscan E, et al. Evaluation of neonatal oral and rectal microbiota in dogs delivered by c-section, from birth to weaning. Vet J. 2026;319:106816. doi:10.1016/j.tvjl.2026.106816
Claes I, Samp AK, Salichs M, Homedes J, Beasley S. Viability and pathogen inhibition activity of Lactiplantibacillus plantarum YUN-V2.0 and Lacticaseibacillus rhamnosus YUN-S1.0 present in a probiotic ear drops. In: Proceedings of the 35th European Veterinary Dermatology Congress; 2025 Sep 11-13; Bilbao, Spain. p. 137.
Diniz DCC, Ribeiro MG, Dias GS, Viana GB, Okamoto AS, Machado LHA. Antimicrobial activity of Lactobacillus casei on Staphylococcus pseudintermedius isolates. Vet Dermatol. 2025;36(4):485-493. doi:10.1111/vde.13325
Discepolo D, Kelley R, Watson A, Perry E. Impacts to canine dermal microbiota associated with repeated bathing. Front Vet Sci. 2023;10:1204159. doi:10.3389/fvets.2023.1204159
Faccin M, O’Neill AM, Lawhon SD, Worthing KA, Wiener DJ, Gallo RL, et al. Staphylococcus felis C4 exhibits in vitro antimicrobial activity against methicillin-resistant Staphylococcus pseudintermedius in a novel canine skin explant model. Vet Dermatol. 2025;36(1):24-33. doi:10.1111/vde.13308
Felten V, Turck JL, Unterer S, Favrot C, Suchodolski J, Fischer NM, et al. An insight into the gut microbiota of healthy and allergic West Highland Whiter Terrier dogs. PLoS One. 2025;20(8):e0328100. doi:10.1371/journal.pone.0328100
Felten V, West EA, Martini F, Favrot C, Unterer S, Suchodolski J, et al. Faecal Microbiota Transplantation Reduces Lesion Severity and Medication Use in Canine Atopic Dermatitis: A Randomised, Placebo-Controlled, Double-Blinded Clinical Trial. Vet Dermatol. 2026;37(5):735-744. doi:10.1111/vde.70092
Gallow G, Juhola J, Ferguson E, Loeffler A, Hendricks A, Frosini S, et al. Clotrimazole reduces but does not abolish fungal dysbiosis following potent antibacterial monotherapy for canine otitis externa. In: Proceedings of the 35th European Veterinary Dermatology Congress; 2025 Sep 11-13; Bilbao, Spain. p. 154.
García-Fonticoba R, Ferrer L, Francino O, Cuscó A. Dermis and subcutis of healthy dogs lack of a bacterial microbiota. In: Proceedings of the 31st European Veterinary Dermatology Congress; 2019 Sep 26-28; Liverpool, United Kingdom. p. 131.
Ghibaudo G, Olivero D, Gentilini F, Turba ME. Impact of a topical hydrocortisone aceponate spray on the canine ear canal microbiome: a pilot longitudinal study. In: Proceedings of the 36th European Veterinary Dermatology Congress; 2026 Aug 27-29; Lille, France. p. 152.
Gonçalves M, Fernandes B, Alves SP, Pereira H, Prego MT, Lourenço AM. Preliminary Measurement of Faecal Short-Chain Fatty Acids in Dogs With Canine Atopic Dermatitis. Vet Dermatol. 2026;37(1):45-50. doi:10.1111/vde.70015
Grant L, Mohammadi Dehcheshmeh M, Ebrahimie E, Khabiri A, Veltman T, Shipstone M, et al. The effect of daily oral probiotic and postbiotic supplementation on the canine skin microbiota: insights from culture-dependent and long-read 16S rRNA gene sequencing methods. In: Proceedings of the North American Veterinary Dermatology Forum; 2025 Apr. p. 164-165.
Guidi EEA, Gramenzi A, Persico P, Di Prinzio R, Di Simone D, Cornegliani L. Effects of Feeding a Hypoallergenic Diet with a Nutraceutical on Fecal Dysbiosis Index and Clinical Manifestations of Canine Atopic Dermatitis. Animals (Basel). 2021;11(10). doi:10.3390/ani11102985
Hakanen E, Lehtimäki J, Salmela E, Tiira K, Anturaniemi J, Hielm-Björkman A, et al. Urban environment predisposes dogs and their owners to allergic symptoms. Sci Rep. 2018;8(1):1585. doi:10.1038/s41598-018-19953-3
Harvey R, Krumbeck J. A 5-month temporal, quantitative study investigating the core microbiome on the axilla, umbilical region, and groin of 15 healthy dogs in the UK. Am J Vet Res. 2025;86(7). doi:10.2460/ajvr.25.01.0014
Hayashi A, Kakiyama S, Kawano K, Harima-Mizusawa N, Kobayashi T, Kaga C, et al. Fecal Lipid Metabolites and Microbiota Alterations in Dogs With Concurrent Atopic Dermatitis and Adverse Food Reaction. Allergy. 2026;81(7):2549-2552. doi:10.1111/all.70370
Hemida MBM, Salin S, Vuori KA, Moore R, Anturaniemi J, Rosendahl S, et al. Puppyhood diet as a factor in the development of owner-reported allergy/atopy skin signs in adult dogs in Finland. J Vet Intern Med. 2021;35(5):2374-2383. doi:10.1111/jvim.16211
Juhola J, Brennan E, Ferguson EA, Loeffler A, Hendricks A, Frosini SM, et al. Fungal dysbiosis following antibacterial monotherapy in canine otitis externa. In: Proceedings of the 34th European Veterinary Dermatology Congress; 2023 Aug 31-Sep 2; Gothenburg, Sweden. p. 156.
Karakaya E, Satıcıoğlu İB, Yarım D, Güran Ö, Güran C, Alpman U, et al. Culture and Metagenomic Insights into the Ear Microbiota in Dogs with Healthy Ears and Otitis Externa. Vet Sci. 2026;13(3). doi:10.3390/vetsci13030250
Kasai T, Fukui Y, Aoki K, Ishii Y, Tateda K. Changes in the ear canal microbiota of dogs with otitis externa. J Appl Microbiol. 2021;130(4):1084-1091. doi:10.1111/jam.14868
Kawano K, Iyori K, Kondo N, Yamakawa S, Fujii T, Funasaka K, et al. Clinical effects of combined Lactobacillus paracasei and kestose on canine atopic dermatitis. Pol J Vet Sci. 2023;26(1):131-136. doi:10.24425/pjvs.2023.145014
Kiewsiri C, Patumcharoenpol P, Kovitvadhi A, Chermprapai S. Efficacy of Heat-Killed Lactobacillus plantarum L-137 Supplementation in Treatment of Canine Atopic Dermatitis. Vet Dermatol. 2026. Sous presse (publication en ligne). doi:10.1111/vde.70139
Kim H, Rather IA, Kim H, Kim S, Kim T, Jang J, et al. A Double-Blind, Placebo Controlled-Trial of a Probiotic Strain Lactobacillus sakei Probio-65 for the Prevention of Canine Atopic Dermatitis. J Microbiol Biotechnol. 2015;25(11):1966-9. doi:10.4014/jmb.1506.06065
Kobayashi T, Glatz M, Horiuchi K, Kawasaki H, Akiyama H, Kaplan DH, et al. Dysbiosis and Staphylococcus aureus colonization drives inflammation in atopic dermatitis. Immunity. 2015;42(4):756-766. doi:10.1016/j.immuni.2015.03.014
Korbelik J, Singh A, Rousseau J, Weese JS. Analysis of the otic mycobiota in dogs with otitis externa compared to healthy individuals. Vet Dermatol. 2018;29(5):417-e138. doi:10.1111/vde.12665
Korbelik J, Singh A, Rousseau J, Weese JS. Characterization of the otic bacterial microbiota in dogs with otitis externa compared to healthy individuals. Vet Dermatol. 2019;30(3):228-e70. doi:10.1111/vde.12734
Lehtimäki J, Sinkko H, Hielm-Björkman A, Laatikainen T, Ruokolainen L, Lohi H. Simultaneous allergic traits in dogs and their owners are associated with living environment, lifestyle and microbial exposures. Sci Rep. 2020;10(1):21954. doi:10.1038/s41598-020-79055-x
Lehtimäki J, Sinkko H, Hielm-Björkman A, Salmela E, Tiira K, Laatikainen T, et al. Skin microbiota and allergic symptoms associate with exposure to environmental microbes. Proc Natl Acad Sci U S A. 2018;115(19):4897-4902. doi:10.1073/pnas.1719785115
Léonard C, Taminiau B, Ngo J, Fantini O, Daube G, Fontaine J. Preventive use of a topical anti-inflammatory glucocorticoid in atopic dogs without clinical sign of otitis does not affect ear canal microbiota and mycobiota. Vet Dermatol. 2021;32(4):355-e98. doi:10.1111/vde.12977
Marsella R, Olivry T, Nicklin C, Lopez J. Pilot investigation of a model for canine atopic dermatitis: environmental house dust mite challenge of high-IgE-producing beagles, mite hypersensitive dogs with atopic dermatitis and normal dogs. Vet Dermatol. 2006;17(1):24-35. doi:10.1111/j.1365-3164.2005.00496.x
Marsella R, Santoro D, Ahrens K, Thomas AL. Investigation of the effect of probiotic exposure on filaggrin expression in an experimental model of canine atopic dermatitis. Vet Dermatol. 2013;24(2):260-e57. doi:10.1111/vde.12006
Marsella R, Santoro D, Ahrens K. Early exposure to probiotics in a canine model of atopic dermatitis has long-term clinical and immunological effects. Vet Immunol Immunopathol. 2012;146(2):185-9. doi:10.1016/j.vetimm.2012.02.013
Marsella R. Evaluation of Lactobacillus rhamnosus strain GG for the prevention of atopic dermatitis in dogs. Am J Vet Res. 2009;70(6):735-40. doi:10.2460/ajvr.70.6.735
Martin Cordero A. Bacterial skin infections in small animals. Zaragoza: Grupo Asís Biomedia; 2019.
McEwan NA, Mellor D, Kalna G. Adherence by Staphylococcus intermedius to canine corneocytes: a preliminary study comparing noninflamed and inflamed atopic canine skin. Vet Dermatol. 2006;17(2):151-154. doi:10.1111/j.1365-3164.2006.00503.x
Meason-Smith C, Diesel A, Patterson AP, Older CE, Mansell JM, Suchodolski JS, et al. What is living on your dog’s skin? Characterization of the canine cutaneous mycobiota and fungal dysbiosis in canine allergic dermatitis. FEMS Microbiol Ecol. 2015;91(12). doi:10.1093/femsec/fiv139
Meason-Smith C, Olivry T, Lawhon SD, Hoffmann AR. Malassezia species dysbiosis in natural and allergen-induced atopic dermatitis in dogs. Med Mycol. 2020;58(6):756-765. doi:10.1093/mmy/myz118
Mosca M. Biothérapies et inhibiteurs de JAK en dermatologie. In: VétoAlp 2026 : les défis de la dermatologie. AFVAC Rhône-Alpes; 2026 Mar 15-16; Chamonix-Mont-Blanc, France. p. 23-32.
Mota Sá C, Rodrigues C, Silva V, Azeredo J, Melo LDR. Successful bacteriophage therapy of pyoderma caused by methicillin-resistant Staphylococcus pseudintermedius in a dog. Vet Dermatol. 2025;36(2):227-230. doi:10.1111/vde.13328
Mueller RS, Banovic F, Bensignor E, Santoro D, Nuttall T. Treatment of Canine Atopic Dermatitis: Updated Guidelines From the International Committee on Allergic Diseases of Animals (ICADA). Vet Dermatol. 2026. Sous presse (publication en ligne). doi:10.1111/vde.70128
Ngo J, Taminiau B, Fall PA, Daube G, Fontaine J. Ear canal microbiota – a comparison between healthy dogs and atopic dogs without clinical signs of otitis externa. Vet Dermatol. 2018;29(5):425-e140. doi:10.1111/vde.12674
Noli C, Varina A, Barbieri C, Pirola A, Olivero D. Analysis of Intestinal Microbiota and Metabolic Pathways before and after a 2-Month-Long Hydrolyzed Fish and Rice Starch Hypoallergenic Diet Trial in Pruritic Dogs. Vet Sci. 2023;10(7). doi:10.3390/vetsci10070478
O’Neill AM, Worthing KA, Kulkarni N, Li F, Nakatsuji T, McGrosso D, et al. Antimicrobials from a feline commensal bacterium inhibit skin infection by drug-resistant S. pseudintermedius. Elife. 2021;10:e66793. doi:10.7554/eLife.66793
Ohshima-Terada Y, Higuchi Y, Kumagai T, Hagihara A, Nagata M. Complementary effect of oral administration of Lactobacillus paracasei K71 on canine atopic dermatitis. Vet Dermatol. 2015;26(5):350-3, e74-5. doi:10.1111/vde.12224
Older CE, Rodrigues Hoffmann A, Hoover K, Banovic F. Characterization of Cutaneous Bacterial Microbiota from Superficial Pyoderma Forms in Atopic Dogs. Pathogens. 2020;9(8). doi:10.3390/pathogens9080638
Older CE, Rodrigues Hoffmann A. Considerations for performing companion animal skin microbiome studies. Vet Dermatol. 2024;35(4):367-374. doi:10.1111/vde.13250
Osumi T, Shimada T, Sakaguchi M, Tsujimoto H. A double-blind, placebo-controlled evaluation of orally administered heat-killed Enterococcus faecalis FK-23 preparation in atopic dogs. Vet Dermatol. 2019;30(2):127-e36. doi:10.1111/vde.12725
Pacheco RCF, Lins LF, DE Brito LP, DE Andrade Calaça PR, Porto ALF, Cavalcanti MTH. Probiotics as an adjunct in the treatment of canine atopic dermatitis: a systematic review and meta-analysis of in vivo studies in dogs. J Vet Med Sci. 2025;87(9):1068-1077. doi:10.1292/jvms.24-0471
Paul NC, Latronico F, Moodley A, Nielsen SS, Damborg P, Guardabassi L. In vitro adherence of Staphylococcus pseudintermedius to canine corneocytes is influenced by colonization status of corneocyte donors. Vet Res. 2013;44(1):52. doi:10.1186/1297-9716-44-52
Pierezan F, Olivry T, Paps JS, Lawhon SD, Wu J, Steiner JM, et al. The skin microbiome in allergen-induced canine atopic dermatitis. Vet Dermatol. 2016;27(5):332-e82. doi:10.1111/vde.12366
Prélaud P. Otites et dermatite atopique canine. In: Journées annuelles du GEDAC (AFVAC); 2022. p. 21.
Puigdemont A, D’Andreano S, Ramió-Lluch L, Cuscó A, Francino O, Brazis P. Effect of an anti-inflammatory pomegranate otic treatment on the clinical evolution and microbiota profile of dogs with otitis externa. Vet Dermatol. 2021;32(2):158-e37. doi:10.1111/vde.12930
Rodrigues Hoffmann A, Patterson AP, Diesel A, Lawhon SD, Ly HJ, Elkins Stephenson C, et al. The skin microbiome in healthy and allergic dogs. PLoS One. 2014;9(1):e83197. doi:10.1371/journal.pone.0083197
Rodrigues Hoffmann A. Gut microbiome and atopic dermatitis in people and animals. In: Proceedings of the 10th World Congress of Veterinary Dermatology; 2024 Jul; Boston, USA. p. 137-140.
Rodrigues Hoffmann A. Otic microbiome: from healthy ears to otitis externa and media. In: Proceedings of the North American Veterinary Dermatology Forum; 2026 Apr 30-May 2. p. 121-124.
Rodrigues Hoffmann A. The skin microbiome of dogs and cats. In: Proceedings of the North American Veterinary Dermatology Forum; 2022 Apr. p. 100-105.
Rodriguez-Campos S, Rostaher A, Zwickl L, Fischer N, Brodard I, Vidal S, et al. Impact of the early-life skin microbiota on the development of canine atopic dermatitis in a high-risk breed birth cohort. Sci Rep. 2020;10(1):1044. doi:10.1038/s41598-020-57798-x
Rostaher A, Morsy Y, Favrot C, Unterer S, Schnyder M, Scharl M, et al. Comparison of the Gut Microbiome between Atopic and Healthy Dogs-Preliminary Data. Animals (Basel). 2022;12(18). doi:10.3390/ani12182377
Rostaher A, Rodriguez-Campos S, Deplazes P, Zwickl L, Akdis AC, Urwyler A, et al. Atopic dermatitis in West Highland white terriers – Part III: early life peripheral blood regulatory T cells are reduced in atopic dermatitis. Vet Dermatol. 2021;32(3):239-e63. doi:10.1111/vde.12939
Rostaher A. Prevention of canine atopic dermatitis – turning dreams into reality. In: Proceedings of the 36th European Veterinary Dermatology Congress; 2026b Aug 27-29; Lille, France. p. 35-36.
Rostaher A. Targeting the microbiome for canine atopic dermatitis treatment. In: VétoAlp 2026 : les défis de la dermatologie. AFVAC Rhône-Alpes; 2026a Mar 15-16; Chamonix-Mont-Blanc, France. p. 14-17.
Santoro D, Fagman L, Zhang Y, Fahong Y. Clinical efficacy of spray-based heat-treated lactobacilli in canine atopic dermatitis: a preliminary, open-label, uncontrolled study. Vet Dermatol. 2021;32(2):114-e23. doi:10.1111/vde.12915
Santoro D. Beneficial bacteria and atopic dermatitis: how do they interact with the immune system? In: Proceedings of the North American Veterinary Dermatology Forum; 2022 Apr. p. 92-100.
Santoro D. Clinical efficacy of spray containing two strains of Lactobacilli in canine allergic dermatitis: a preliminary, open-label, uncontrolled study. In: Proceedings of the 35th European Veterinary Dermatology Congress; 2025 Sep 11-13; Bilbao, Spain. p. 202.
Schmidt V, Nuttall T, Fazakerley J, McEwan N. Staphylococcus intermedius binding to immobilized fibrinogen, fibronectin and cytokeratin in vitro. Vet Dermatol. 2009;20(5-6):502-508. doi:10.1111/j.1365-3164.2009.00804.x
Simou C, Thoday KL, Forsythe PJ, Hill PB. Adherence of Staphylococcus intermedius to corneocytes of healthy and atopic dogs: effect of pyoderma, pruritus score, treatment and gender. Vet Dermatol. 2005;16(6):385-391. doi:10.1111/j.1365-3164.2005.00484.x
Sinkko H, Lehtimäki J, Lohi H, Ruokolainen L, Hielm-Björkman A. Distinct healthy and atopic canine gut microbiota is influenced by diet and antibiotics. R Soc Open Sci. 2023;10(4):221104. doi:10.1098/rsos.221104
Smart K, Pieper JB, Viall AK, Noxon JO, Berger DJ. Comparison of commercial next-generation sequencing assays to conventional culture methods for bacterial identification and antimicrobial susceptibility of samples obtained from clinical cases of canine superficial bacterial folliculitis. Vet Dermatol. 2025;36(1):14-23. doi:10.1111/vde.13299
So Severo J, Mendes R, Gmyterco V, Farias M, Mongruel A, Fischer N, et al. Assessment of the gut microbiome and its relationship with the severity of atopic dermatitis in dogs. In: Proceedings of the 36th European Veterinary Dermatology Congress; 2026 Aug 27-29; Lille, France. p. 193.
Song H, Mun SH, Han DW, Kang JH, An JU, Hwang CY, et al. Probiotics ameliorate atopic dermatitis by modulating the dysbiosis of the gut microbiota in dogs. BMC Microbiol. 2025;25(1):228. doi:10.1186/s12866-025-03924-6
Štempelová L, Micenková L, Andrla P, Strompfová V. The skin microbiome on healthy and inflammatory altered canine skin determined by next generation sequencing. Front Microbiol. 2025;16:1528747. doi:10.3389/fmicb.2025.1528747
Sugita K, Shima A, Takahashi K, Ishihara G, Kawano K, Ohmori K. Pilot evaluation of a single oral fecal microbiota transplantation for canine atopic dermatitis. Sci Rep. 2023;13(1):8824. doi:10.1038/s41598-023-35565-y
Tang S, Prem A, Tjokrosurjo J, Sary M, Van Bel MA, Rodrigues-Hoffmann A, et al. The canine skin and ear microbiome: A comprehensive survey of pathogens implicated in canine skin and ear infections using a novel next-generation-sequencing-based assay. Vet Microbiol. 2020;247:108764. doi:10.1016/j.vetmic.2020.108764
Tate DE, Tanprasertsuk J, Jones RB, Maughan H, Chakrabarti A, Khafipour E, et al. A Randomized Controlled Trial to Evaluate the Impact of a Novel Probiotic and Nutraceutical Supplement on Pruritic Dermatitis and the Gut Microbiota in Privately Owned Dogs. Animals (Basel). 2024;14(3). doi:10.3390/ani14030453
Thomsen M, Künstner A, Wohlers I, Olbrich M, Lenfers T, Osumi T, et al. A comprehensive analysis of gut and skin microbiota in canine atopic dermatitis in Shiba Inu dogs. Microbiome. 2023;11(1):232. doi:10.1186/s40168-023-01671-2
Tizard IR. Veterinary immunology. 11th ed. St. Louis: Elsevier; 2025.
Torres S. Skin microbiome: the little we know about this fascinating microscope world. In: Proceedings of the North American Veterinary Dermatology Forum; 2017 Apr. p. 49.
Uchiyama J, Osumi T, Mizukami K, Fukuyama T, Shima A, Unno A, et al. Characterization of the oral and faecal microbiota associated with atopic dermatitis in dogs selected from a purebred Shiba Inu colony. Lett Appl Microbiol. 2022;75(6):1607-1616. doi:10.1111/lam.13828
Ural K, Erdoğan S, Erdoğan H, Pasa S, Özalp T. Leaky gut and intestinal mucosal injury among dogs with clinically subclassified atopic dermatitis. Braz J Vet Med. 2026;48:e011725. doi:10.29374/2527-2179.bjvm011725
Whittle M, Carvell-Miller L, Abrams C, Watson P, Amos G. Disruption, recovery, and stability of the canine skin microbiome after chlorhexidine and mild detergent intervention. In: Proceedings of the 36th European Veterinary Dermatology Congress; 2026 Aug 27-29; Lille, France. p. 211.
Whittle M, Gilroy R, Castillo-Fernandez J, McKay L, Brenda F, Chodroff Foran R, et al. Uncovering microbiome biomarkers of canine atopic dermatitis. In: Proceedings of the 35th European Veterinary Dermatology Congress; 2025 Sep 11-13; Bilbao, Spain. p. 218.
Whittle MJ, Castillo-Fernandez J, Amos GCA, Watson P. Metagenomic characterisation of canine skin reveals a core healthy skin microbiome. Sci Rep. 2024;14(1):20104. doi:10.1038/s41598-024-63999-5
Widmer G, Ferrer L, Favrot C, Paps J, Huynh K, Olivry T. Glucocorticosteroids and ciclosporin do not significantly impact canine cutaneous microbiota. BMC Vet Res. 2018;14(1):51. doi:10.1186/s12917-018-1370-y
Yamazaki C, Rosenkrantz W, Griffin C. Pilot evaluation of Enterococcus faecium SF68 as adjunctive therapy for oclacitinib-responsive adult atopic dermatitis in dogs. J Small Anim Pract. 2019;60(8):499-506. doi:10.1111/jsap.13042
